
감기가 낫는 원리에서 시작해 이중항체·ADC까지, 항체의약품이 작동하는 방식
감기에 걸렸다가 낫는다. 그리고 같은 바이러스에는 한동안 다시 잘 걸리지 않는다. 누구나 겪는 일이다.
이때 몸 안에서는 무슨 일이 일어났을까.
몸이 그 바이러스에 딱 들러붙는 단백질을 잔뜩 만들어 풀어놓았다. 이 단백질은 바이러스에 달라붙어 세포 안으로 못 들어가게 막고, 면역세포를 불러와 처리하게 한다. 이게 항체다.
여기까지는 교과서에 나온다. 그런데 한 걸음만 더 들어가면 이상한 점이 하나 튀어나온다.
몸은 그 바이러스를 처음 봤다. 그런데 어떻게 거기에 딱 맞는 단백질을 만들어 냈을까. 열쇠 구멍을 본 적도 없는데 맞는 열쇠를 깎아 낸 셈이다.
답부터 말하면, 몸은 그 항체를 새로 만든 게 아니다. 원래 갖고 있었다.
몸은 무엇에 붙을지도 모르는 항체를 수십억 종류나 미리 만들어 둔다. 그러다 바이러스가 들어오면 그중 우연히 잘 맞는 놈을 찾아내고, 그놈을 만들던 세포에게 계속 만들라고 시킨다. 설계라기보다 제비뽑기에 가깝다.
그런데 이 방식을 쓰려면 항체는 조건 두 개를 동시에 만족해야 한다. 그리고 그 두 조건은 서로 부딪친다. 우리가 아는 Y자 모양은 그 충돌을 해결한 결과물이다.
이 Y자를 제대로 이해하면 따라오는 것이 많다. Protein A로 정제하는 이유, pH를 3.5까지 떨어뜨려도 항체가 멀쩡한 이유, 이중항체 정제가 유독 까다로운 이유가 전부 여기서 나온다. 면접에서 "그 구조가 공정에서 뭘 결정합니까"를 물었을 때 답이 달라지는 지점이기도 하다.
용어부터 맞추고 간다. 항체와 면역글로불린(Ig)은 같은 것을 다르게 부르는 말이다. 기능으로 부르면 항체, 물질로 부르면 면역글로불린이다. 단일클론항체는 세포 하나에서 갈라져 나온 집단이 만든, 서열이 완전히 똑같은 항체를 말한다. 영문 약어로는 mAb를 쓴다. 따로 밝히지 않은 항체는 전부 IgG로 보면 된다.
1. 항체는 왜 하필 Y자인가
충돌하는 두 조건이 무엇인지부터 보자.
조건 하나 — 종류가 어마어마하게 많아야 한다
제비뽑기가 통하려면 뽑을 종이가 충분히 많아야 한다. 상자에 열 장뿐인데 당첨 종이가 그 안에 있을 확률은 낮다.
항체도 마찬가지다. 세상에 존재하는 온갖 바이러스와 세균, 심지어 아직 나타나지도 않은 것까지 커버하려면 서로 모양이 다른 항체가 수십억 종류는 있어야 한다. 여기까지는 쉽게 납득이 된다.
조건 둘 — 붙잡은 다음이 진짜 문제다
항체가 바이러스에 달라붙었다고 하자. 그다음엔 어떻게 될까.
사실 항체는 아무것도 죽이지 못한다. 독을 뿜지도 않고 껍질을 부수지도 않는다. 항체가 할 수 있는 일은 달라붙어 있는 것뿐이다. 실제로 처리하는 쪽은 면역세포와 보체 단백질이다.
그러니 항체는 붙잡은 다음에 신호를 보내야 한다. 여기 잡아 놨으니 와서 처리하라는 신호다.
그런데 신호를 받는 쪽 입장에서 생각해 보자. 항체가 수십억 종류인데 신호 방식까지 제각각이면 어떻게 될까. 면역세포는 그중 하나도 못 알아듣는다. 수십억 개짜리 암호표를 외우고 다닐 수는 없다.
그래서 두 번째 조건이 생긴다. 신호 부분은 모두 똑같아야 한다.
두 조건을 한 분자에 집어넣는 방법
정리하면 이렇다. 앞은 수십억 가지여야 하고, 뒤는 딱 한 가지여야 한다. 한 분자가 이걸 동시에 만족하기는 어려워 보인다.
해법은 의외로 단순했다. 분자를 앞뒤로 갈라 버린 것이다.(Fab/Fc) 붙잡는 부분과 신호를 보내는 부분을 따로 두고, 앞쪽만 개체마다 바꾸고 뒤쪽은 손대지 않았다.
그 결과가 Y자다. 두 팔 끝은 전부 제각각, 몸통은 전부 동일. 그래서 팔 끝을 가변부(variable region), 몸통을 불변부(constant region)라고 부른다.
이 한 줄만 기억하고 가면 뒤에 나오는 내용이 훨씬 쉬워진다.
"항체는 앞은 다 다르고, 뒤는 다 똑같다."
왜 플랫폼 공정이 성립하는지, 왜 Protein A 한 번으로 정제가 끝나는지, 왜 이중항체는 그게 안 되는지. 전부 이 한 문장에서 갈라져 나온다.
Fab과 Fc — 이름은 실험대에서 붙었다
Y자의 두 팔은 Fab, 몸통은 Fc라고 부른다. 이름만 보면 무슨 뜻인지 짐작이 안 간다. 사연이 있다.
1950년대 말에 항체를 효소로 잘라 보던 사람들이 있었다. 파파인이라는 효소를 넣었더니 조각이 세 개로 나뉘었다. 두 개는 항원을 붙잡았고, 나머지 하나는 아무것도 안 하면서 결정만 잘 자랐다.
그래서 앞의 둘은 "항원 붙잡는 조각"이라는 뜻으로 fragment antigen-binding, 뒤의 하나는 "결정이 잘 되는 조각"이라는 뜻으로 fragment crystallizable이 됐다. 구조를 알고 붙인 이름이 아니라 실험대에서 본 대로 붙인 이름이다. 지금 보면 앞의 둘이 가변부, 뒤의 하나가 불변부다.
팔이 왜 두 개일까
Y자를 보면 팔이 두 개다. 대칭이라 예뻐서가 아니다.
항체가 항원을 붙잡는 힘은 생각보다 약하다. 한 팔로만 잡으면 금방 떨어진다. 그런데 두 팔이 동시에 잡으면 이야기가 달라진다. 두 팔이 우연히 같은 순간에 다 떨어져야 하는데, 그 확률은 한 팔이 떨어질 확률의 제곱이라 급격히 작아진다.
벨크로를 생각하면 된다. 한 가닥은 손가락으로 툭 떼지만 수백 가닥이 걸리면 힘을 줘서 뜯어야 한다. 한 팔의 결합력을 affinity, 두 팔이 합쳐 내는 힘을 avidity라고 따로 부르는 이유다.
힌지 — 팔꿈치가 없으면 두 팔을 못 쓴다
그런데 두 팔을 동시에 쓰려면 조건이 하나 더 붙는다. 두 팔 사이 간격이 항원 사이 간격과 맞아야 한다.
항원이 세포 표면에 촘촘히 박혀 있으면 팔을 좁게 모아야 하고, 듬성듬성 박혀 있으면 넓게 벌려야 한다. 팔 각도가 고정돼 있으면 둘 중 한 상황에서는 팔 하나만 쓰게 된다.
그래서 팔과 몸통 사이에 힌지(hinge)라는 흐물흐물한 구간이 있다. 프롤린과 시스테인이 몰려 있는 짧은 구간인데, 여기가 접히고 벌어지면서 각도가 조절된다. 말 그대로 팔꿈치다.
다만 공짜는 아니다. 흐물거린다는 말은 곧 가위질하기 쉽다는 뜻이기도 하다. 배양액에 숙주세포에서 새어 나온 단백질분해효소가 많으면 여기가 제일 먼저 잘린다. 항체 원액에서 잡히는 절편(fragment)의 상당수가 힌지 근처에서 생긴다. 유연함의 대가다.
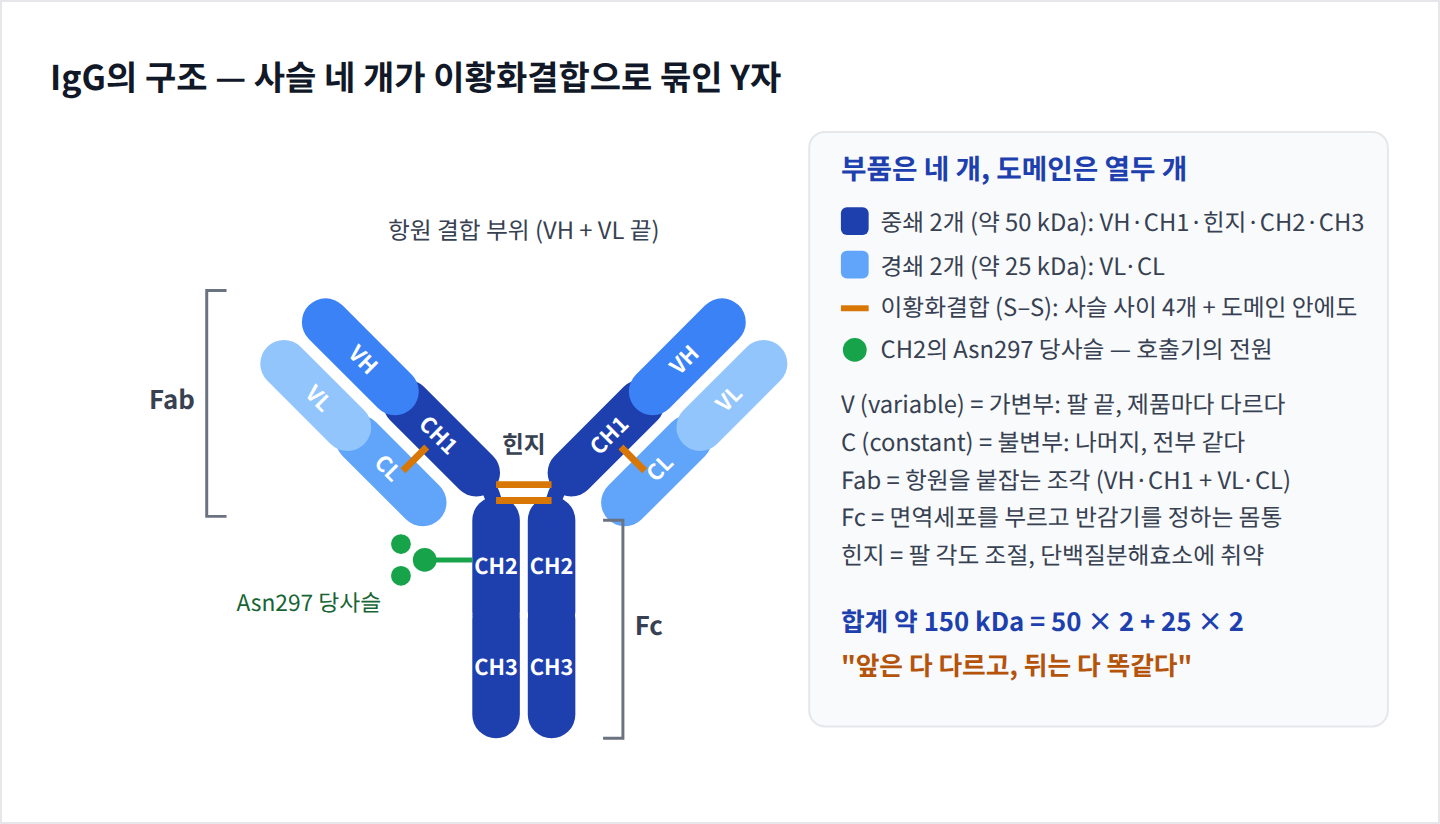
| 부위 | 위치 | 하는 일 | 공정에서 걸리는 것 |
| 가변부 (VH·VL) | 두 팔 끝 | 항원을 붙잡는다 | 제품마다 다름. 응집 성향과 전하를 좌우 |
| CH1·CL | 팔의 아랫부분 | 두 사슬을 붙들어 둔다 | 이중항체에서 짝이 엉키는 자리 |
| 힌지 | 팔과 몸통 사이 | 팔 각도를 조절한다 | 절편이 생기는 취약 지점 |
| CH2 | 몸통 윗부분 | 신호를 보낸다 | 제일 먼저 풀림. 응집의 시작점 |
| CH3 | 몸통 아랫부분 | 두 사슬을 맞물린다 | CH2와의 경계면을 Protein A가 잡음 |
2. 실제로 뜯어보면 부품은 네 개다
Y자라고 했지만 이 분자가 Y자 모양 부품 하나로 찍혀 나오는 건 아니다. 긴 사슬과 짧은 사슬이 조립된 결과가 Y자로 보이는 것이다.
그 조립을 뜯어보기 전에, 어떤 항체를 뜯을지부터 정해야 한다.
다섯 종류 중에 IgG만 약이 된 이유
사람 몸의 항체는 IgG·IgA·IgM·IgE·IgD 다섯 종류다. 그런데 의약품으로 쓰는 것은 사실상 IgG 하나뿐이다.
나머지는 왜 안 쓸까. IgM을 예로 들면 이해가 빠르다. IgM은 Y자 다섯 개가 뭉쳐 있는 형태라 분자량이 90만에 육박한다. 덩치가 크면 정제도 까다롭고 조직 깊숙이 들어가지도 못한다. 게다가 혈중에 오래 남지 않는다.
IgG는 크기가 적당하고, 튼튼하고, 무엇보다 혈중에서 3주 가까이 버틴다. 약은 오래 남아야 자주 안 맞아도 된다. 이만한 조건이 없다.
긴 사슬 둘, 짧은 사슬 둘
IgG 한 분자는 중쇄(heavy chain) 2개와 경쇄(light chain) 2개로 되어 있다. 부품은 이게 전부다. 긴 사슬 두 개가 나란히 붙어 Y자의 등뼈를 이루고, 짧은 사슬 두 개가 양쪽 팔에 하나씩 덧붙는다.
중쇄는 아미노산 약 450개로 무게가 약 50 kDa, 경쇄는 약 215개로 약 25 kDa. 다 더하면 약 150 kDa이 된다. 면접에서 "항체 분자량이 얼마죠"라고 물으면 150 kDa이 답이다.
참고로 아스피린은 분자량이 180이다. 항체는 그 800배가 넘는다. 저분자 의약품과 항체 의약품이 왜 완전히 다른 공장에서 만들어지는지는 이 숫자 하나로 대충 설명이 된다.
도메인 — 사슬은 구슬을 꿴 목걸이처럼 생겼다
사슬은 밋밋한 줄이 아니다. 비슷한 크기의 덩어리가 줄줄이 꿰인 모양이고, 이 덩어리 하나하나를 도메인이라고 부른다.
중쇄는 VH–CH1–힌지–CH2–CH3 순으로 도메인이 이어진다. 앞의 V는 가변부(variable), 뒤의 C는 불변부(constant)를 뜻한다. 경쇄는 VL–CL 딱 두 개뿐이다.
그래서 팔 하나는 중쇄의 앞쪽 절반과 경쇄 한 개가 나란히 짝을 이룬 구조가 된다. 경쇄에는 카파(κ)와 람다(λ) 두 종류가 있는데 사람은 카파가 더 많고, 치료용 항체도 대부분 카파형이다.
이황화결합 — 사슬을 붙들어 두는 못
사슬 네 개가 그냥 옆에 놓여 있는 건 아니다. 시스테인끼리 이황화결합으로 못질이 돼 있다.
IgG1을 기준으로 사슬끼리 잇는 못이 네 개다. 힌지에서 중쇄끼리 두 개, 중쇄와 경쇄 사이에 하나씩 두 개. 여기에 도메인마다 안쪽에도 못이 하나씩 박혀 있어서, 한 분자에 이황화결합이 열여섯 개쯤 들어간다.
못이 이렇게 많다는 건 이 분자가 상당히 단단하다는 뜻이다. 나중에 pH 3.5에서 30분을 버티는 이야기가 나오는데, 그게 가능한 이유가 여기에 있다.
반대로 말하면 못 하나만 빠져도 다른 분자가 된다. 배양 후반부에 배양액이 환원 쪽으로 기울면 중쇄와 경쇄가 떨어져 나가고, 그게 회수 공정에서 절편으로 잡힌다. 순도시험이 굳이 비환원 조건과 환원 조건을 나눠서 보는 것도 이 때문이다. 환원시키면 못이 전부 빠져 중쇄·경쇄 띠 두 개만 보이니까, 원래 어떻게 조립돼 있었는지는 비환원에서만 알 수 있다.
3. 수십억 가지를 어떻게 미리 만들어 두나
앞에서 몸이 항체를 수십억 종류나 미리 갖고 있다고 했다. 그런데 여기서 계산이 안 맞는다.
사람의 단백질 암호 유전자를 전부 세어도 2만 개 남짓이다. 항체 한 종류에 유전자 하나씩 배정하면 한참 모자란다. 유전체를 통째로 항체에 몰아줘도 안 된다.
이 문제를 몸은 두 단계로 풀었다.
첫 번째 — 바꿔야 할 곳이 생각보다 적다
먼저 따져 볼 게 있다. 항체를 통째로 다 바꿔야 할까.
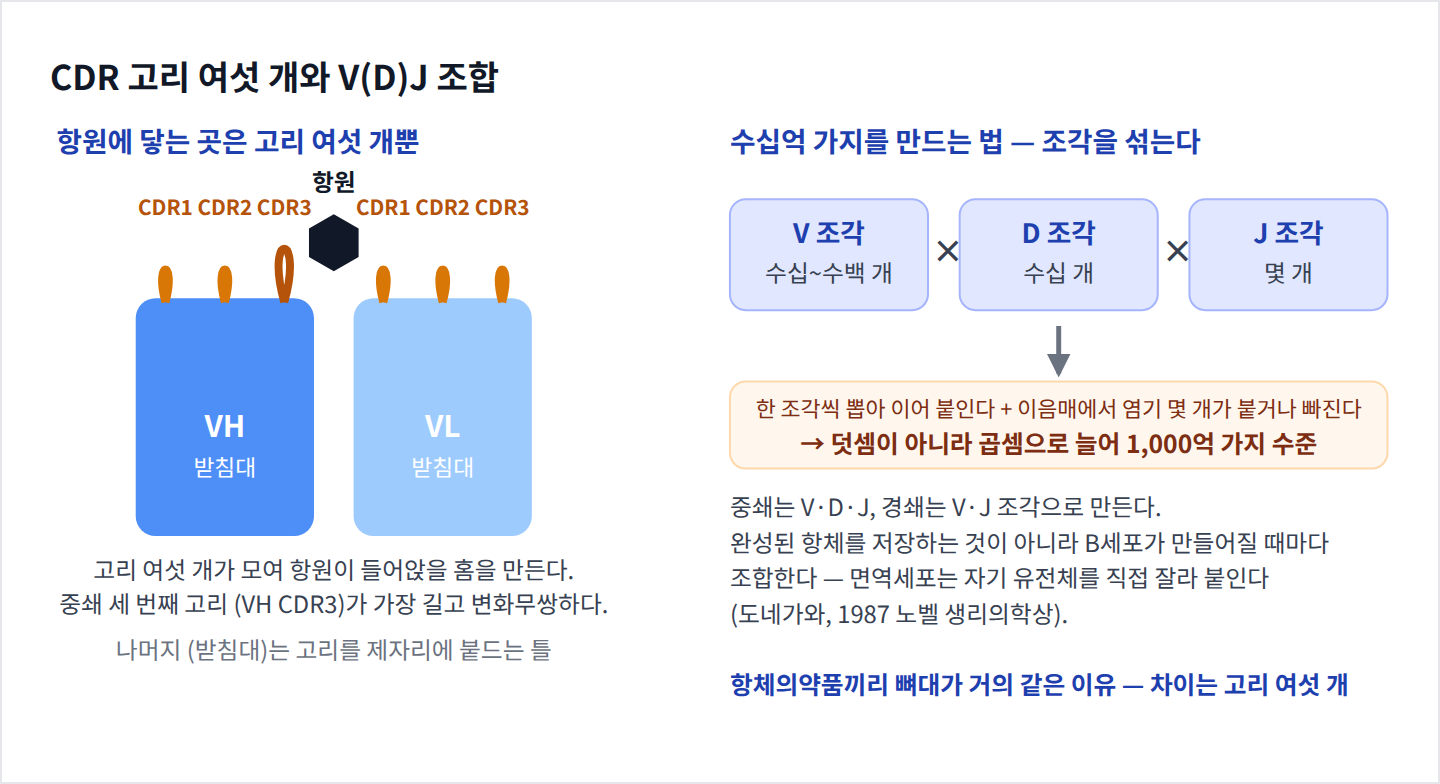
그럴 필요가 없다. 팔 끝의 가변부 안에서도 실제로 항원에 닿는 부분은 밖으로 삐져나온 고리 세 군데뿐이고, 나머지는 그 고리를 제자리에 붙들어 주는 받침대다. 손으로 물건을 잡을 때 실제로 닿는 건 손가락 끝이지 손목이 아닌 것과 같다.
이 고리를 CDR(상보성결정부위)이라고 부른다. 중쇄 가변부에 세 개, 경쇄 가변부에 세 개. 고리 여섯 개가 한자리에 모여 항원이 들어앉을 홈을 만든다. 이 여섯 개의 모양과 전하 배치가 그 항체가 무엇을 잡을지를 결정한다.
그중에서도 중쇄의 세 번째 고리가 제일 길고 제일 변화무쌍해서, 특이성의 상당 부분을 이 고리 하나가 책임진다.
두 번째 — 조각을 섞으면 수가 폭발한다
바꿀 곳이 고리 여섯 개로 줄었다. 그래도 수십억 개를 만들려면 여전히 유전자가 모자란다.
여기서 몸이 쓴 수법이 조각을 섞는 것이다.
가변부를 완성된 형태로 저장하지 않는다. 대신 V·D·J라는 세 종류의 조각 상자를 따로 두고(중쇄는 V·D·J, 경쇄는 V·J), B세포가 만들어질 때마다 각 상자에서 하나씩 뽑아 이어 붙인다. 게다가 이어 붙이는 이음매에서 염기가 몇 개씩 더 붙거나 떨어져 나가기까지 한다.
조합의 수는 덧셈이 아니라 곱셈으로 늘어난다. 레고 블록 상자 세 개로 만들 수 있는 조합이 블록 개수보다 훨씬 많은 것과 같다. 이렇게 해서 수백 개의 유전자 조각으로 1,000억 가지 수준의 다양성이 만들어진다.
이걸 밝혀낸 도네가와 스스무는 1987년 노벨 생리의학상을 받았다. 당시 상식은 "유전체는 고정되어 있고 세포는 그걸 읽기만 한다"였다. 면역세포는 자기 유전체를 직접 잘라 붙인다는 발견이 그 상식을 깨뜨렸다.
그래서 항체 의약품끼리는 뼈대가 거의 같다
여기서 산업 쪽으로 이어지는 결론이 하나 나온다.
"휴미라와 키트루다는 뭐가 다릅니까"라는 질문의 정확한 답은 이렇다. 뼈대의 대부분은 같고, 차이는 항원을 잡는 가변부와 서브클래스에 따라 달라지는 불변부 일부 자리에 몰려 있다. 두 항체의 불변부끼리 견주면 90퍼센트 넘게 같고, 가변부 차이의 핵심이 고리 여섯 개다. 앞은 다르고 뒤는 같다는 말이 분자 수준에서 그대로 확인되는 셈이다.
이게 왜 중요하냐면, 뼈대가 같으면 배양 조건도 정제 순서도 시험 항목도 상당 부분 돌려 쓸 수 있기 때문이다. 위탁생산 회사가 고객사가 달라도 비슷한 순서로 처리할 수 있는 근거가 여기에 있다.
플랫폼 공정(platform process)을 설명해 보라는 질문이 나오면 이렇게 답할 수 있다. "항체는 가변부만 다르고 나머지가 공통이라 표준화된 정제 순서를 여러 제품에 재사용할 수 있습니다. 다만 가변부의 등전점과 소수성이 제품마다 달라서 완충액 조성과 용출 조건은 제품별로 다시 잡아야 한다고 이해하고 있습니다." 플랫폼이 뭔지와 그 한계가 어딘지를 한 번에 말하는 답이다.